 PDF Download
 PubReader
 Export Citation
 Email the Author
 Share Facebook
 Share Twitter
 Cited by 0 Article
 Metrics (View:4)


서 론
최근 현대인들의 생활환경이 산업화 및 경제성장으로 인해 급격하게 변화함에 따라 다양한 생활습관성 질환의 발병률은 전 세계적으로 끊임없이 증가하고 있다(Lozano et al., 2012; Organisation mondiale de la santé, 2014). 염증반응의 지속적이거나 과도한 발생은 조직 내 손상을 일으키고 이와 관련된 활성 산소종과 염증성 cytokine은 다양한 질병의 매개체로서 중요한 역할을 한다(Ambade & Mandrekar, 2012). 활성산소종(reactive oxygen species, ROS)은 세포 내 에너지 대사 과정에서 자연적으로 생성되는 부산물로, 정상적인 수준에서는 세포 신호 전달, 증식 및 분화 조절에 중요한 역할을 수행한다(Zhang, 2011; Forrester et al., 2018). 그러나 ROS의 생성이 과도하게 증가하거나 항산화 방어 시스템이 이를 적절히 조절하지 못할 경우 산화적 불균형이 초래되며, 이는 산화 스트레스 상태로 이어진다(Sies, 2015). 이러한 산화 스트레스는 세포 내 미토콘드리아, peroxisome, NADPH oxidase 및 cyclooxygenase (COX)와 같은 효소계에서 생성되는 superoxide (O2–), hydrogen peroxide (H2O2), hydroxyl radical (•OH) 등의 반응성 물질에 의해 단백질, 지질 및 DNA에 손상을 유발한다(Valko et al., 2007). 그 결과, 산화 스트레스는 노화, 암, 심혈관계 질환 및 만성 염증 질환을 포함한 다양한 병리적 상태와 밀접하게 연관되는 것으로 보고되고 있다(Dubois-Deruy et al., 2020). 염증 반응은 외부 병원체의 침입이나 물리적 손상에 대응하기 위한 선천 면역계의 방어 기전으로, 생체 항상성 유지에 필수적인 역할을 수행한다(Beutler, 2004). 그러나 이러한 반응이 과도하게 지속되거나 면역세포에 의해 염증성 cytokine이 지속적으로 분비될 경우, 오히려 조직 손상과 만성 염증 상태를 유발할 수 있다(Balkwill & Mantovani, 2001). 염증이 유도되면 다양한 염증 매개인자(pro-inflammatory mediators)가 생성되며, 대표적으로 inducible nitric oxide synthase (iNOS)에 의해 생성되는 nitric oxide (NO)와 cyclooxygenase-2 (COX-2)에 의해 생성되는 prostaglandin E2 (PGE2)가 있다. 이러한 물질들은 염증 반응의 증폭과 유지에 중요한 역할을 한다(Ricciotti & FitzGerald, 2011; Förstermann & Sessa, 2012). 특히, 그람음성 세균의 외막 구성 성분인 lipopolysaccharide (LPS)는 대식세포 및 단핵구를 활성화하여 tumor necrosis factor-α (TNF-α), interleukin-1β (IL-1β), interleukin-6 (IL-6) 등의 염증성 cytokine의 발현을 증가시키는 것으로 알려져 있다(Medzhitov, 2001). 이 중 TNF-α는 초기 염증 반응을 유도하는 주요 매개 인자로 작용하며, 이후 IL-6 등의 발현을 촉진하여 염증 반응을 더욱 증폭시키는 역할을 한다(Tanaka et al., 2014). 멜라닌은 주로 표피의 기저층 및 모낭 부위에 존재하는 멜라닌세포에서 생성되어, 세포 내 멜라노좀(melanosome)에서 합성된다. 이후 생성된 멜라닌은 멜라닌세포의 수상돌기를 통해 인접한 각질형성세포로 전달되고, 각질형성세포의 이동과 함께 피부 표면으로 올라가 피부색 형성에 관여한다(Cichorek et al., 2013; Videira et al., 2013). 멜라닌 생합성 과정은 멜라노좀 내에서 티로신(tyrosine)이 티로시나아제(tyrosinase)에 의해 도파(DOPA)로 전환되는 단계에서 시작되며, 이어서 도파퀴논(dopaquinone)으로 산화된다. 이후 일련의 자동 산화 반응을 거쳐 5,6-dihydroxyindole 및 indole-5,6-quinone 등의 중간체가 형성되고, 최종적으로 중합 반응을 통해 멜라닌 고분자가 생성된다(Videira et al., 2013). 이러한 멜라닌은 자외선으로부터 피부를 보호하는 주요 색소로, 피부의 항상성 유지에 중요한 역할을 한다. 그러나 자외선 노출, 노화 등 다양한 요인으로 인해 멜라닌의 생성이 비정상적으로 증가하거나 피부의 대사 기능이 저하될 경우, 멜라닌이 피부에 축적되어 기미, 주근깨 등과 같은 색소 침착 현상을 유발할 수 있다(Costin & Hearing, 2007). 산화적 스트레스와 지속적인 염증 반응은 피부 조직에서 melanogenesis를 촉진하는 주요 요인으로 알려져 있으며, 과도한 melanogenesis를 유도한다. 이에 따라 산화적 스트레스를 조절하는 것은 피부 염증과 색소침착을 동시에 완화하기 위한 중요한 전략으로 여겨진다. 발효는 유용 미생물이 기질을 분해 및 전환하여 새로운 생리활성 물질을 생성하는 과정으로 정의된다(Rezac et al., 2018; Voidarou et al., 2021). 특히 발효를 통해 얻어진 추출물은 효소 활성 증가 및 생체 이용률 향상 등의 장점을 지니며, 이로 인해 기능성 효과가 보다 빠르게 발현될 수 있다(Shah et al., 2023). 젖산균은 대표적인 발효 미생물로서, 탄수화물을 젖산으로 전환하는 통성혐기성균에 속한다. 이 과정에서 유기산 및 다양한 대사산물이 생성되며, 이는 식품의 저장성을 개선하고 관능적 품질을 향상시킬 뿐만 아니라 기능성 증진에도 기여한다(Leroy & De Vuyst, 2004; Quinto et al., 2014). 하고초(Prunella vulgaris)는 꿀풀과(Labiatae)에 속하는 다년생 초본 식물로, 어린 개체는 식용으로 이용되며 한방에서는 지상부를 건조한 형태로 약재로 사용된다. 전통적으로 하고초는 이뇨, 해열, 항염 및 혈압 강하 등의 효능을 지니는 것으로 알려져 있다(Pan et al., 2022). 화학적 성분으로는 ursolic acid, caffeic acid, rutin, hyperoside를 비롯하여 비타민, 카로티노이드, 탄닌 및 다양한 유기산이 보고되어 있으며, 특히 지상부에는 sterol과 함께 ursane 및 oleanane 계열의 triterpenoid 화합물이 함유되어 있다(Pan et al., 2022). 또한, quercetin, hyperoside, ethyl caffeic acid 등과 같은 플라보노이드 및 다양한 sterol과 지방산 성분이 분리, 동정된 바 있다(Zholdasbayev et al., 2023). 이러한 성분 조성에 기반하여 하고초는 항산화, 항염증, 항알레르기 및 항돌연변이 등 다양한 약리활성을 나타내는 것으로 보고되고 있다(Mîrza et al., 2024).
본 연구에서는 하고초를 식품 유래 젖산균으로 발효하여 얻은 추출물을 대상으로 산화적 스트레스와 연관된 항염증 활성 및 tyrosinase 저해활성을 비교, 분석하였다. 더불어, 대식세포 모델을 활용하여 발효 처리에 따른 항염증 효과를 평가하고, 염증 관련 유전자 발현에 대한 조절 능력을 분석함으로써 하고초 열수 추출 발효물의 기능성 식품 소재로의 활용 가능성을 조사하고자 하였다.
재료 및 방법
하고초(P. vulgaris L.)는 2023년도 경상남도 지리산에서 재배하여 수확 후 자연 건조된 하고초를 구매하여 상온에서 보관하여 사용하였다. 건조된 하고초는 분쇄기(HMF-1600PB, Hanil, Korea)를 이용하여 30초간 분쇄하여 분말 형태로 준비하였다. 이후 하고초 분말 200 g에 3차 멸균 증류수 2 L를 첨가한 뒤, heating plate를 이용하여 100℃에서 1시간 열수 추출을 수행하였다. 추출 후 멸균된 면포를 사용하여 고형물을 제거하였으며, 여과된 추출액은 887×g에서 15분간 원심분리하여 상층액을 회수하였다. 회수된 상층액에 멸균 3차 증류수를 가하여 최종 부피를 2 L로 조정하여 10% (w/w) 하고초 열수 추출물을 제조하였다. 제조된 추출물(P. vulgaris L. extract; PVE)은 사용 전까지 4℃에서 보관하였다.
본 연구에서 선발된 젖산균 균주의 동정을 위하여 16S rRNA 유전자 염기서열 분석을 수행하였다. 각 균주로부터 genomic DNA는 QIAquick Gel Extraction Kit (QIAGEN, Hilden, Germany)를 사용하여 추출한 후, universal primer인 16S-F (5’-AGA GTT TGA TCC TGG CTC AG-3’)와 16S-R (5’-AAG GAG GTG ATC CAG CCG CA-3’)를 사용하였다(Lee et al., 2009). 16S rRNA gene 증폭을 위해 PCR thermocycler (T-100; Bio-Rad, Hercules, CA, USA)를 사용하여 95℃에서 4분간 denaturation, 55℃에서 1분간 annealing, 72℃에서 90초간 extension을 하는 조건으로 30 cycles를 수행하였다. PCR product를 분리한 후, DNA sequencing[㈜바이오닉스(Seoul, Korea)]을 통해 염기서열을 분석하였고, NCBI BLAST search를 이용하여 염기서열을 분석한 후 동정하였다.
하고초 발효 균주는 배추김치로부터 분리된 Levilactobacillus brevis CCK1-43을 사용하였다. 균주는 MRS broth에서 30℃, 혐기적 조건하에 2회 계대 배양하여 총 48시간 배양한 후 발효에 사용하였다. 멸균 삼각 플라스크에 10% 하고초 열수 추출물 150 mL를 분주하고 균주 배양액(1×10⁹ CFU/mL)을 5% (v/v)로 접종한 후, shaking incubator (30℃, 80 rpm)에서 3일간 발효를 진행하였다. 발효 과정 중 생균수 변화를 확인하기 위해, 일차별로 시료를 회수하여 단계 희석 후 MRS 평판배지에 도말하였다. 도말된 MRS 배지는 혐기적 조건에서 30℃, 24시간 배양하였으며, 형성된 집락을 계수하여 colony-forming unit (CFU)/mL로 나타내었다. 하고초 열수 추출 발효물의 전처리를 위해 일차별로 25 mL씩 회수하여 50 mL conical tube에 옮겨 담고 Speed vac을 이용하여 10시간 동안 감압회전 농축하였다. 농축한 하고초 열수 추출 발효물을 –60℃ deep freezer에서 12시간 동결시킨 후 동결건조기(Alpha 1-4, Martin Christ, Germany)로 72시간 동안 건조하여 고형분의 무게를 측정하였다. 측정된 고형분 함량에 따라 3차 멸균 증류수를 이용하여 20,000 µg/mL 농도로 조제하여 사용하였다.
쥐 대식세포주인 RAW264.7 세포는 Korea Cell Line Bank (Seoul, Korea)로부터 분양받아 사용하였다. 세포 실험에 사용된 시약으로는 RPMI 배지, non-heat-inactivated fetal bovine serum (FBS), penicillin–streptomycin, trypsin–EDTA 및 phosphate-buffered saline (PBS)을 Welgene (Gyeongsan, Korea)에서 구입하였고, LPS는 Sigma-Aldrich에서 구매하였다. 세포 배양을 위해 10% non-heat- inactivated fetal bovine serum (FBS)과 1% penicillin–streptomycin이 첨가된 RPMI 배지 (with phenol red)를 사용하였다. 세포는 cell culture dish에 분주한 후, 37℃, 5% CO2 및 상대습도 95% 조건의 incubator에서 monolayer를 형성할 때까지 배양하였다. 세포 수 측정을 위해 배양된 세포를 PBS로 2회 세척한 후, trypsin–EDTA로 처리하여 세포를 분리하였다. 세포를 회수한 뒤, 적절한 농도로 희석하여 hemocytometer (Marienfeld Superior, Germany)를 이용해 세포 수를 계수하였다.
하고초 열수 추출 발효물의 RAW264.7 세포 생존율 평가는 Quanti-Max™ WST-8 Cell Viability Assay Kit (Biomax, Seoul, Korea)를 이용하여 수행하였다. RAW264.7 세포를 1×10⁵ cells/mL로 96 well plate에 분주한 후, 37℃, 5% CO2 및 상대습도 95% 조건에서 24시간 배양하였다. 이후 배지를 제거하고, 1% FBS 및 1% penicillin–streptomycin이 포함된 phenol red-free RPMI 배지에 시료를 농도별로 희석하여 처리하였다. 시료 처리 1시간 후, LPS를 최종 농도 1 µg/mL가 되도록 처리하고 24시간 추가 배양하였다. 배양 후 WST-8 시약을 처리하여 1시간 반응시킨 뒤, microplate reader (SpectraMax iD3, Molecular Devices)를 이용하여 450 nm에서 흡광도를 측정하였다. 세포 생존율은 대조군 대비 시료 처리군의 흡광도를 기준으로 백분율(%)로 환산하여 나타내었다.
하고초 열수 추출 발효물의 RAW264.7 세포의 NO 측정은 Griess Reagent System (Promega, Madison, WI, USA)으로 측정하였다. RAW264.7 세포를 1×10⁵ cells/mL로 96-well plate에 분주한 후, 37℃, 5% CO2 및 상대습도 95% 조건에서 24시간 배양하였다. 이후 배지를 제거하고, 1% FBS 및 1% penicillin–streptomycin이 포함된 phenol red-free RPMI 배지에 시료를 농도별로 희석하여 처리하였다. 시료 처리 1시간 후, LPS를 최종 농도 1 µg/mL가 되도록 처리하고 24시간 추가 배양하였다. 배양 후 상등액을 회수하여 Griess reagent를 순차적으로 반응시킨 뒤, microplate reader (SpectraMax iD3, Molecular Devices, USA)를 이용하여 540 nm에서 흡광도를 측정하였다. NO 생성량은 nitrite standard를 이용하여 정량하였다.
RAW264.7 세포의 유전자 발현 분석을 위해 세포를 24-well plate에 1×10⁵ cells/mL로 분주한 후, 37℃, 5% CO2 및 상대습도 95% 조건에서 24시간 배양하였다. 이후 배지를 제거하고, 1% FBS 및 1% penicillin–streptomycin이 포함된 phenol red-free RPMI 배지에 시료를 농도별로 희석하여 처리하였다. 시료 처리 1시간 후, LPS를 최종 농도 1 µg/mL가 되도록 처리하고 20시간 추가 배양하였다.
배양 후 세포를 PBS로 세척한 뒤 TakaRa MiniBEST Universal RNA extraction kit (Kusatsu, Japan)를 이용하여 total RNA를 추출하였다. RNA의 농도와 순도는 microplate reader (SpectraMax ABS Plus, Molecular Devices)를 이용하여 측정하였다. 추출된 RNA는 High Capacity cDNA Reverse Transcription Kit (Thermo Fisher Scientific, Waltham, MA, USA)를 이용하여 cDNA로 합성하였다. 항염증 관련 유전자의 발현 분석을 위해 PowerUp SYBR Green Master Mix (Thermo Fisher Scientific, USA)와 forward 및 reverse primer, cDNA를 포함하는 반응 혼합물로 구성하여 qRT-PCR을 수행하였다. 반응 조건은 95℃에서 2분간 초기 변성 후, 95℃ 15초 및 60℃ 34초의 조건으로 40 cycles를 수행하였다. 유전자 발현량은 housekeeping gene인 β-actin을 기준으로 정규화하여 분석하였다. 본 연구에 사용된 primer sequence는 Table 1에 나타내었다.
하고초 열수 추출 발효물의 tyrosinase 저해 활성은 Tyrosinase inhibition assay를 기반으로 Yagi et al. (1987)의 방법을 일부 수정하여 측정하였다. 20,000 µg/mL 농도로 전처리한 시료를 pH 6.8 조건으로 조제하여 사용하였다. 96-well plate에 시료 50 µL와 2 mM L-tyrosine 용액 100 µL를 분주하여 혼합한 후, 400 unit/mL mushroom tyrosinase (Sigma-Aldrich, St. Louis, MO, USA) 50 µL를 첨가하였다. 반응 혼합물을 37℃에서 30분간 반응시킨 뒤 microplate reader (SpectraMax ABS Plus, Molecular Devices; San Jose, CA, USA)를 이용하여 475 nm에서 흡광도를 측정하였다.
Tyrosinase 저해 활성은 시료를 pH 6.8 조건에서 20,000 µg/mL 농도로 조제하여 측정하였다. 시료 50 µL와 8.33 mM L-DOPA 용액 또는 2.0 mM L-tyrosine 용액 100 µL를 96-well plate에 분주하여 혼합한 후, 각각 200 또는 400 unit/mL mushroom tyrosinase (Sigma-Aldrich) 50 µL를 첨가하였다. 반응 혼합물을 37℃에서 각각 20분 또는 30분간 반응시킨 뒤 microplate reader (SpectraMax ABS Plus, Molecular Devices)를 이용하여 475 nm에서 흡광도를 측정하였다. Tyrosinase 저해 활성은 시료 처리구와 무처리 대조구 간의 흡광도 차이를 기반으로 계산하였으며, 발효 시료 자체의 색과 흡광도에 의한 간섭을 보정하기 위하여 각 시료별 blank를 측정하여 blank를 보정한 흡광도 값을 이용하여 계산하였다. 결과는 흡광도 감소율을 백분율(%)로 나타내었다.
결과 및 고찰
젖산균 발효는 다양한 식물성 소재의 기능성 향상을 위한 방법으로 널리 활용되고 있으며, 발효과정에서 생성되는 유기산 및 다양한 대사산물은 기존 생리활성 성분의 전환 또는 새로운 활성 물질의 생성을 유도하는 것으로 알려져 있다(Leroy & De Vuyst, 2004; Quinto et al., 2014). 이에 본 연구에서는 김치 유래 젖산균인 L. brevis CCK1-43을 이용하여 하고초 열수 추출물을 발효하고, 발효에 따른 항염증 및 tyrosinase 저해 활성 변화를 평가하였다.
하고초 열수 추출물의 발효를 위해 사용한 김치 유래 분리균주 CCK1-43은 16S rRNA sequencing을 통해 L. brevis 16S rRNA gene sequence와 99% 상동성을 나타내어 L. brevis CCK1-43으로 명명하였다. 하고초 발효는 3일간 진행하며 L. brevis CCK1-43의 생균수를 측정한 결과, 1일 차에 8.27~8.35 log CFU/mL, 2일 차에 8.15~8.26 log CFU/mL, 3일 차에 8.13~8.21 log CFU/mL로 전반적으로 큰 변화 없이 발효 기간 동안 유사한 수준을 유지하여 발효 기간 동안 생균수가 일정하게 유지되는 것으로 확인되었다. 일반적으로 식물 추출물에는 폴리페놀 및 유기산 성분이 함유되어 있어 미생물의 생육을 저해시키는 것으로 보고(Takó et al., 2020) 되어 있으나, 본 실험의 발효 과정에서 균체 수가 급격히 감소하지 않았다. 이는 하고초 성분에 의해 발효 균주의 생육이 저해되지 않고 유지된 것을 의미한다.
하고초 열수 추출물 및 열수 추출 발효물 처리 시 RAW264.7 세포 생존율은 Fig. 1A에 나타냈다. 시료는 500, 1,000 및 2,000 µg/mL 농도로 처리하였으며, 모든 농도에서 90% 이상의 세포 생존율이 확인되었다. 이는 처리한 시료가 RAW264.7 세포에 대해 유의미한 세포독성을 나타내지 않음을 의미한다. 이후 실험에서는 NO 생성 저해 효과를 평가하기 위해 세포독성을 나타내지 않는 최소 농도인 500 µg/mL를 적용하였다.
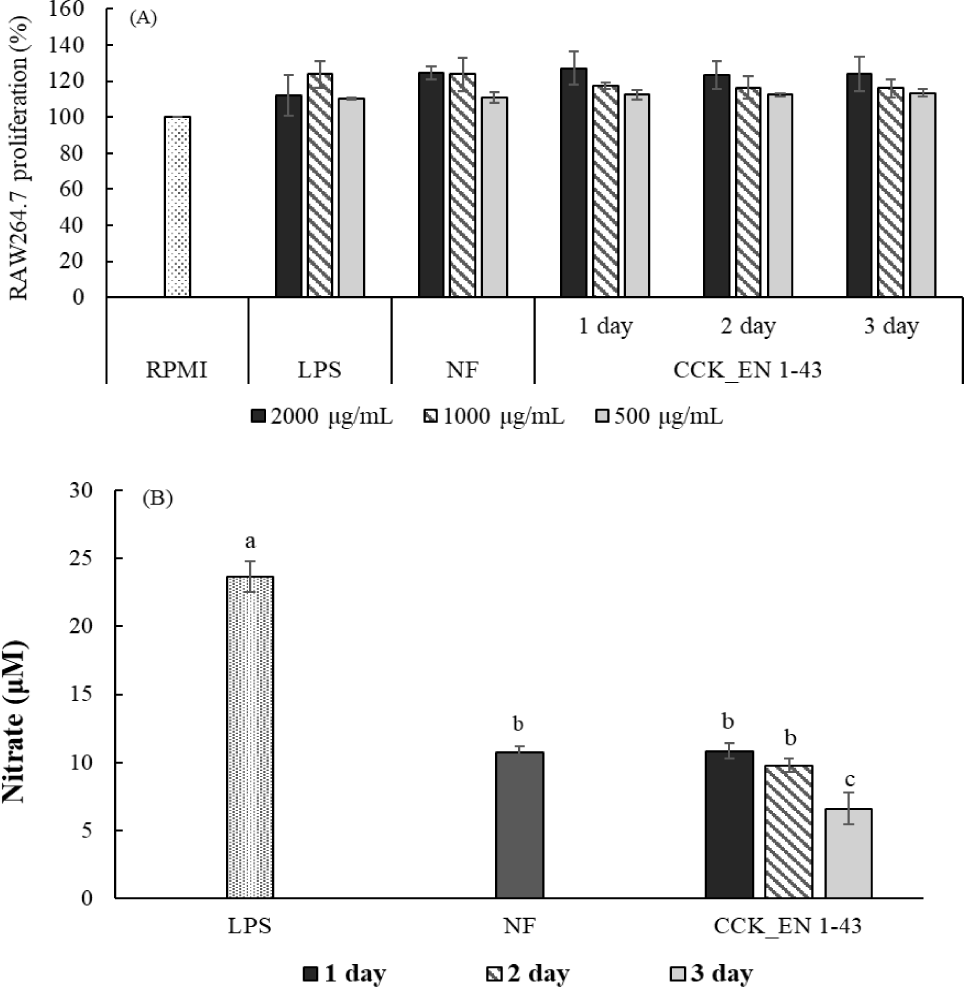
RAW264.7 세포에서 LPS로 유도된 NO 생성에 대한 하고초 열수 추출 발효물의 저해 활성은 Fig. 1B에 나타내었다. LPS (1 µg/mL) 단독 처리구에서 NO 생성량은 23.63±1.13 µM으로 확인되었다. 시료를 500 µg/mL 농도로 처리한 결과, 발효 전 하고초 열수 추출물의 NO 생성량은 10.77±0.41 µM이었으며, 발효 후에는 6.63±1.17~ 10.85±0.56 µM 범위로 나타나 LPS 처리구 대비 유의적으로 감소되었음을 확인할 수 있다. 발효 1일차 및 2일차 추출물은 비발효구와 비교하여 유의적인 차이가 확인되지 않았으나, 발효 3일차 추출물에서는 NO 생성량이 비발효구를 포함한 다른 처리구에 비해 유의적으로 감소하는 것으로 나타났다. 발효 초기 단계에서는 NO 억제 효과에 유의적인 변화가 나타나지 않으나, 발효 기간이 경과함에 따라 NO 생성 억제 활성이 유의적인 차이를 나타냈다. 이와 유사하게 L. brevis 174A로 발효한 백작약(Paeoniae Radix Alba) 추출물이 LPS로 자극된 RAW264.7 세포에서 NO 생성뿐만 아니라 TNF-α, IL-6, IL-1β 및 iNOS 발현을 감소시키는 것으로 보고되어 있다(Shakya et al., 2021). 또한 L. plantarum으로 발효한 층꽃나무(Caryopteris incana)가 NO 생성과 함께 TNF-α, IL-6 및 IL-1β 생성을 억제한다고 보고되어 있다(Park et al., 2018). 이러한 결과는 젖산균 발효가 식물 유래 소재의 항염증 활성을 향상시킬 수 있음을 시사한다.
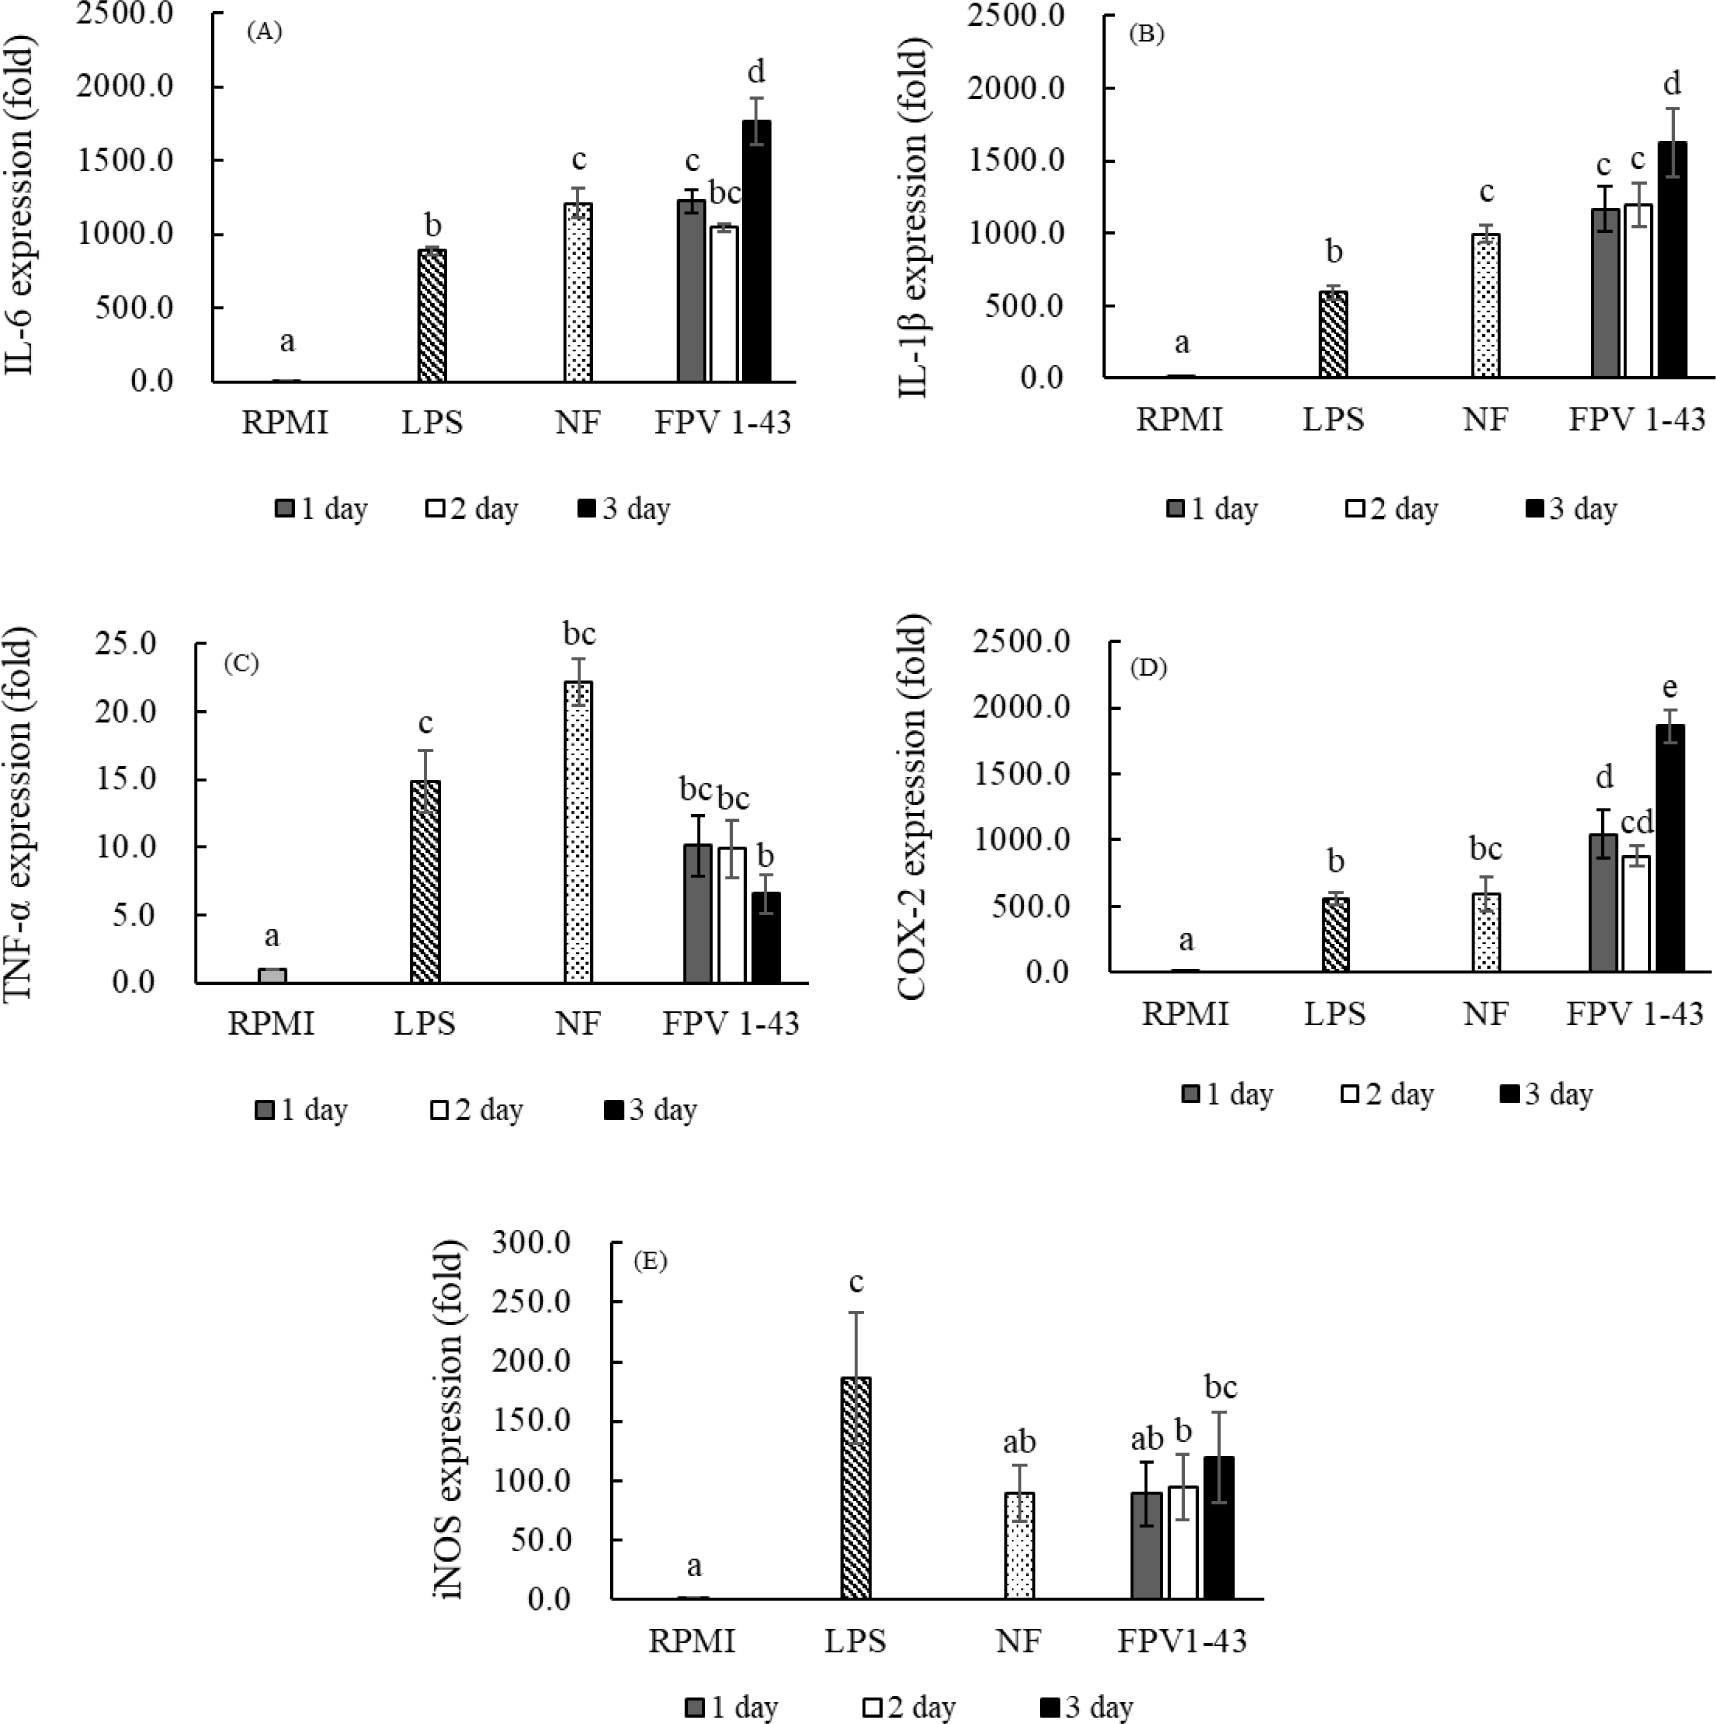
RAW264.7 세포에 하고초 열수 추출 발효물(500 µg/mL)을 처리한 후, LPS (1 µg/mL)로 염증을 유도하고, IL-6, IL-1β, TNF-α, COX-2 및 iNOS의 발현 변화를 qRT-PCR을 통해 분석하였다(Fig. 2A-E). 비발효 하고초 열수 추출물의 경우, IL-6, IL-1β, COX-2 및 TNF-α 발현은 LPS 처리구 대비 증가하는 경향을 보였으며, iNOS 발현은 유의적으로 감소됨을 확인할 수 있었다. 반면, L. brevis CCK1-43 균주로 발효한 시료는 LPS 처리구 대비 IL-6, IL-1β, COX-2의 발현이 증가했으나, LPS 처리구와 비발효 시료 대비 TNF-α 발현을 유의적으로 감소시켰다. 특히, L. brevis CCK1-43 균주의 3일차 열수 추출 발효물에서만 TNF-α 발현이 LPS 처리구 및 비발효 시료 대비 유의적으로 감소하였다. 한편, iNOS 발현은 발효 시료 모두 비발효 시료 대비 유의적인 억제 효과가 나타나지 않았다. 이러한 결과는 하고초 열수 추출 발효물이 특정 시간 조건에서 주요 염증 관련 유전자 중 TNF-α 발현에 대한 선택적인 억제 효과를 나타내며, 특정 염증 인자의 조절을 위한 기능성 소재로 활용될 가능성을 시사한다. TNF-α는 대식세포에서 LPS 자극 초기 단계에서 빠르게 발현되는 대표적인 pro-inflammatory cytokine으로 알려져 있으며, 이후 IL-6, IL-1β 및 iNOS와 같은 염증 관련 인자의 발현을 유도하는 중요한 상위 조절 인자로 작용한다(Tanaka et al., 2014). 본 연구에서 하고초 열수 추출 발효물이 TNF-α 발현을 유의적으로 감소시킨 결과는 단순한 NO 생성 저해 효과뿐 아니라, 염증 반응 초기 단계 자체를 조절할 가능성을 시사한다. 특히 TNF-α는 NF-κB signaling pathway 활성화와 밀접하게 연관되어 있으며, 이는 iNOS 및 COX-2 발현 증가를 유도하여 과도한 NO 생성 및 염증 반응을 증폭시키는 것으로 보고되어 있다(Tanaka et al., 2014). 따라서 본 연구에서 확인된 NO 생성 감소 결과는 TNF-α 발현 억제에 따른 염증 반응 초기 조절 효과와 관련된 것으로 판단된다. 한편, 하고초는 rosmarinic acid, caffeic acid, flavonoid 및 triterpenoid 계열 화합물을 함유하는 것으로 알려져 있으며, 이러한 성분들은 항산화 및 항염증 활성을 나타내는 것으로 보고되어 있다(Pan et al., 2022). 식물 추출물 발효 연구 중 백작약 추출물이 TNF-α뿐 아니라 IL-6, IL-1β 및 iNOS 등의 발현을 동시에 억제하는 것으로 보고되었다(Shakya et al., 2021). 반면, 본 연구에서는 특정 시간 조건에서 TNF-α 발현의 경우, LPS 대비 비발효구는 발현량이 증가했으나 3일차 발효구에서 감소가 유의적으로 나타났다. iNOS의 경우, 비발효구와 1, 2일차 발효군에서 LPS 대비 유의적인 발현 감소가 나타났으나, 비발효구와 발효군의 유의적인 차이는 없었다. IL-6, IL-1β 및 COX-2에서는 유의적인 억제 효과가 확인되지 않았다. 염증 매개 인자들은 자극 후 시간 경과에 따라 서로 다른 발현 양상을 나타낼 수 있으므로(Lv et al., 2014; Aki et al., 2020), 본 연구에서 확인된 결과는 특정 시간 조건에서 하고초 열수 추출 발효물의 유의적인 TNF-α 발현 억제 양상이 관찰된 결과로 해석할 수 있다. 이러한 차이는 사용된 식물 소재, 발효 균주 및 발효 과정에서 생성되는 대사산물의 차이에 기인할 수 있다. 따라서 본 연구 결과는 김치에서 분리된 L. brevis CCK1-43 균주로 발효한 하고초 열수 추출 발효물이 본 실험 조건에서 NO 생성 및 TNF-α 발현에 대한 선택적인 조절 효과를 나타내며, 특정 염증 인자의 조절을 위한 기능성 소재로 활용될 가능성을 시사한다.
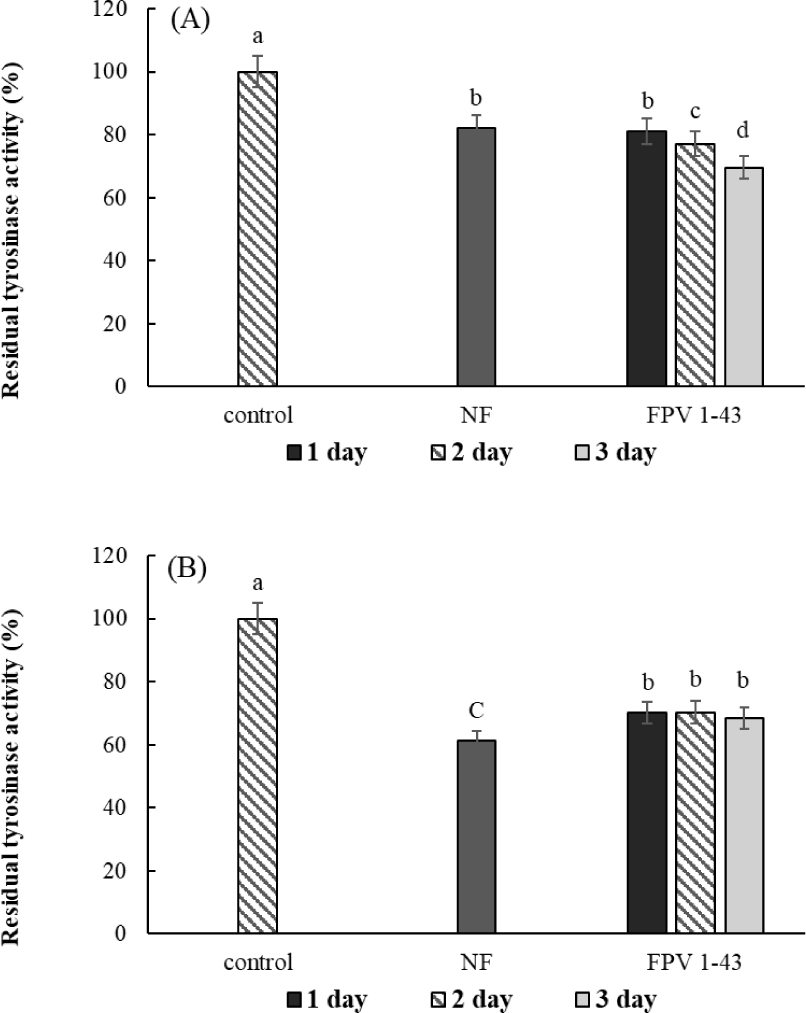
Tyrosinase는 멜라닌 생합성 과정에서 tyrosine을 L-DOPA로 전환시키고, 다시 dopaquinone으로 전환시키는 반응을 촉매하는 속도결정효소(rate-limiting enzyme)로 알려져 있다(Chang, 2009). 따라서 tyrosinase 활성 억제는 과도한 멜라닌 생성을 감소시키기 위한 대표적인 미백 전략으로 활용되고 있다(Pillaiyar et al., 2017). 하고초 열수 추출 발효물의 tyrosinase 저해 효과는 Fig. 3에 나타냈다. 기질로는 L-DOPA와 L-tyrosine을 사용하였다. 발효하지 않은 하고초 열수 추출물의 잔존 tyrosinase 활성은 L-DOPA에서 82.09± 0.53%로 나타났으며, 발효 후에는 69.64±1.88~81.21±0.89% 범위로 확인되었다. L. brevis CCK1-43 균주로 발효한 열수 추출물에서 잔존 tyrosinase 활성은 발효 2일차와 3일차 시료에서 비발효 시료 대비 유의적으로 감소하는 경향을 나타냈으며(Fig. 3A), 발효 3일차 시료에서 가장 낮은 잔존 tyrosinase 활성이 확인되어 가장 높은 저해 효과를 나타냈다. 젖산균 발효에 의한 tyrosinase 저해 활성 증가는 다양한 식물성 소재에서 보고되어 있다(Kim et al., 2017; Makhamrueang et al., 2023). 특히 젖산균은 β-glucosidase와 같은 효소를 생산하여 식물 유래 flavonoid 및 phenolic compound의 배당체(glycoside) 형태를 aglycone 형태로 전환할 수 있으며, 이러한 전환은 생체 이용률과 생리활성을 향상시키는 것으로 알려져 있다(Zhang et al., 2025). 본 연구에서 확인된 tyrosinase 저해 활성 증가는 발효 과정 중 하고초에 함유된 phenolic compound의 구조적 변화 또는 활성 성분의 가용성 증가와 관련이 있을 것으로 판단된다. 또한, 발효 일차별 각 처리구 간에는 유의적인 차이를 나타내어 발효 기간에 따른 추가적인 활성 증가를 확인하였다. 이러한 결과는 L. brevis CCK1-43 발효가 tyrosinase 저해 활성 향상에 기여하였으며, 그 효과는 발효 기간이 증가함에 따라 저해 효과가 증가하는 경향을 나타냈음을 시사한다. 한편, L-tyrosine을 기질로 사용한 경우에는 모든 처리구에서 비발효구보다 잔존 tyrosinase 활성이 증가하는 경향을 보였다(Fig. 3B). 따라서 L. brevis CCK1-43 균주로 발효한 하고초 열수 추출 발효물은 기능성 미백 소재로의 활용 가능성을 시사하며, 특히 L-DOPA 기질 기반의 melanin 생성 억제에 효과적으로 작용할 가능성이 있는 것으로 판단된다. 또한 본 연구에서 확인된 tyrosinase 저해 활성의 증가는 산화적 스트레스와 연관된 melanogenesis 조절 가능성을 보여 주며, 피부 염증 및 색소침착 개선을 위한 기능성 소재로 활용될 가능성을 시사한다.
요 약
본 연구를 통해 김치 유래 젖산균 L. brevis CCK1-43을 이용한 하고초 열수 추출물의 발효는 기능성에 상이한 영향을 미치는 것으로 확인되었다. NO 생성 억제 및 TNF-α 발현 감소 효과는 발효 3일차에서 유의적으로 나타나, 발효 시간이 경과함에 따라 항염증 관련 기능성 성분이 점진적으로 축적되거나 활성화되는 경향을 보였다. 특히 본 실험 조건에서 TNF-α에 대한 선택적인 억제 효과는 하고초 열수 추출 발효물이 특정 시간 조건에서 TNF-α에 대해 선택적으로 작용할 가능성을 시사한다. 반면, tyrosinase 저해 활성의 경우 발효 초기부터 유의적으로 증가하였으며, 발효 기간에 따른 추가적인 증가는 나타나지 않아 발효에 의해 비교적 초기 단계에서 활성 물질의 전환 또는 생성이 이루어졌을 가능성을 시사한다. 이러한 결과는 젖산균 발효가 단순한 생리활성 증가를 넘어, 기능성의 발현 시점과 작용 기전을 조절할 수 있는 중요한 공정임을 의미한다. 따라서 하고초 열수 추출 발효물은 특정 시간 조건에서 NO 생성 및 특정 염증 매개 인자인 TNF-α 발현에 대한 선택적 억제 효과와 tyrosinase 저해 활성을 동시에 갖는 기능성 소재로 활용 가능성이 있으며, 특히 tyrosinase 저해 활성은 산화적 스트레스와 연관된 melanogenesis 조절을 통해 피부 염증 및 색소침착 개선에 기여할 수 있음을 시사한다. 또한, 특정 기능성별 활성 발현에 따른 최적의 발효 조건 및 발효 기간을 설정하는 것이 중요할 것으로 판단된다.


