 PDF Download
 PubReader
 Export Citation
 Email the Author
 Share Facebook
 Share Twitter
 Cited by 0 Article
 Metrics (View:60)


서 론
최근 전 세계적으로 고령화가 가속화됨에 따라 근감소증(sarcopenia)은 노년기 삶의 질을 결정하는 주요 건강 문제로 부각되고 있다(Statistics Korea, 2023). 근감소증은 골격근량과 근기능의 점진적 감소를 특징으로 하며, 낙상, 골절 및 대사질환 발생 위험을 증가시키는 것으로 알려져 있다. 이에 따라 근감소증 예방을 위해서는 충분한 단백질 섭취뿐 아니라 소화율과 필수 아미노산 조성을 고려한 고품질 단백질의 공급이 중요하다. 특히 노년층에서는 anabolic resistance에 의해 단백질 이용 효율이 감소하므로 단백질의 양보다 질적 수준이 더욱 중요하게 작용한다(Choi & Kim, 2024; He et al., 2025).
귀리(Avena sativa L.)는 비교적 높은 단백질 함량과 더불어 불포화지방산 및 식이섬유를 풍부하게 함유한 영양학적으로 우수한 곡물이다(Lee et al., 2016). 또한 avenanthramide를 포함한 다양한 페놀성 화합물을 함유하고 있어 기능성 소재로서의 가치도 인정받고 있다(Dhakal et al., 2019; Lee et al., 2020). 그러나 귀리를 포함한 식물성 단백질은 일반적으로 제한 아미노산(limiting amino acid)에 따른 필수 아미노산 조성의 불균형과 상대적으로 낮은 소화율 및 생체이용률로 인해 동물성 단백질 대비 낮은 단백질 품질을 나타내는 것으로 알려져 있다. 이러한 특성은 단백질 요구량이 증가하고 단백질 이용 효율이 감소하는 고령층에서 식품 소재로 활용하는데 중요한 제한 요인으로 작용할 수 있다(Heijden et al., 2023; Ajomiwe et al., 2024; Calderón et al., 2026). 따라서 귀리의 활용성을 확대하기 위해서는 단백질 품질 개선과 더불어 기능성 증진을 동시에 달성할 수 있는 가공 기술의 적용이 요구된다.
최근 이러한 한계를 극복하기 위한 전략으로 버섯 균사체를 이용한 고체발효(solid-state fermentation)가 주목받고 있다. 버섯 균사체는 배양 과정에서 protease, peptidase 및 cellulase와 같은 다양한 효소를 분비하여 곡물 세포벽과 고분자 물질을 분해하고, 단백질을 저분자 펩타이드 및 유리 아미노산으로 전환함으로써 단백질 소화율과 생체이용률을 향상시키는 것으로 보고되고 있다(Feng et al., 2023; Yegin, 2025). 또한 이러한 발효 과정은 항영양성분 감소 및 기능성 성분의 유리를 촉진하여 식물성 단백질의 영양학적 가치를 개선하는데 기여하는 것으로 알려져 있다(Clark et al., 2022). 더불어 버섯 균사체 자체는 비교적 균형 잡힌 필수 아미노산 조성과 높은 단백질 함량을 갖는 단백질 공급원으로 알려져 있으며, 발효 과정에서 식물성 원료 단백질의 영양학적 품질을 보완하는 데 기여할 수 있다(Derbyshire & Ayoob, 2019).
한편, 버섯 균사체의 종류에 따라 발효 과정에서 분비되는 효소의 조성, 아미노산 프로파일링 및 생성되는 생리활성 물질의 특성이 상이하게 나타나는 것으로 보고되고 있다. Clark et al. (2022)은 표고버섯 균사체가 우수한 단백질 분해 효소 활성을 바탕으로 식물성 단백질의 소화율과 영양학적 품질을 향상시킨다고 보고하였으며, Ayimbila & Keawsompong (2023)은 느타리버섯류가 비교적 높은 단백질 함량과 균형 잡힌 필수 아미노산 조성을 갖는다고 보고하였다. 또한 상황버섯과 차가버섯은 페놀 화합물, 다당류 및 기타 생리활성 물질을 함유하고 있어 우수한 항산화 및 기능성 활성을 나타내는 것으로 알려져 있다(Tee et al., 2024; Wang et al., 2025). 이러한 차이는 버섯 종류에 따라 발효 후 식품의 영양 및 기능적 특성에 차별적인 영향을 미칠 수 있음을 보여준다. 그러나 서로 다른 버섯 균사체를 적용하여 곡류의 단백질 품질과 기능성 변화를 통합적으로 비교·분석한 연구는 제한적인 실정이다.
기존 버섯 균사체를 활용한 고체발효 선행연구들은 주로 균체 증식 조건 확립이나 단순 영양성분의 변화를 확인하는 데 집중되어 있었다. 이에 본 연구에서는 상황버섯, 차가버섯, 표고버섯 및 노랑느타리버섯 균사체를 귀리에 접종하여 고체발효를 진행하고, 이 과정에서 나타나는 발효 전후의 아미노산 프로파일 재구성, 영양학적 제한 아미노산의 전환 패턴, 지질 대사 및 기능성 성분의 정량·정성적 변화를 종합적으로 연계하여 평가하였다. 이를 통해 기존 고체발효 연구와 차별화되는 영양·기능적 신규성을 밝히고, 고체발효 산물의 식품 소재화 가능성을 제시하고자 하였다.
재료 및 방법
본 연구에 사용된 버섯 균사체 균주는 산림청 국립산림과학원(Korea Forest Research Institute, Seoul, Korea)으로부터 분양받아 사용하였다. 사용된 균주의 명칭 및 분양번호는 상황버섯(Phellinus linteus, NIFoS 1335), 차가버섯(Inonotus obliquus, NIFoS 2496), 표고버섯(Lentinula edodes, 코드 없음), 노랑느타리버섯(Pleurotus citrinopileatus, NIFoS 1818)이다. 상황버섯, 차가버섯, 표고버섯 및 노랑느타리버섯 균사체를 접종한 귀리를 각각 SH, CH, SI 및 YO로 명명하였으며, 무처리 귀리(control)를 대조구로 사용하였다. 실험에 사용된 귀리는 2023년 국내에서 수확한 ‘대양’ 품종으로, 정읍명품귀리사업단(Jeongeup, Korea)로부터 제공받아 사용하였다.
버섯 균사체는 PDA 배지에서 전배양한 후, 균사체 절편을 YGM 액체배지 500 mL에 접종하여 30일간 배양함으로써 액체 종균을 제조하였다. 귀리는 세척 후 시료당 800 g씩 내열용기에 담고 수분함량을 60%로 조정한 뒤, 121℃에서 60분간 고압멸균하였다. 이후 시료를 18℃까지 냉각한 후 제조된 액체 종균을 각각 20 mL씩 접종하여 균일하게 혼합하였다. 접종된 시료는 암조건의 배양실에서 20℃ 및 이산화탄소 농도 2,000 ppm 이하 조건으로 25일간 고체발효를 수행하였다. 발효가 완료된 시료는 동결건조 후 분쇄하여 분석용 시료로 사용하였다.
수분함량은 AOAC (2019) 방법에 준하여 105℃ 상압가열건조법으로 측정하였다. 분쇄 시료 1 g을 수분 정량용 알루미늄 캔에 취한 후 105℃ dry oven에서 3시간 건조하였으며, 이후 데시케이터에서 냉각하여 건조 전후의 중량 차를 이용해 수분함량(%)을 산출하였다.
조단백질 함량은 AOAC (2019) 방법에 따라 micro-Kjeldahl법으로 분석하였다. 분쇄 시료 0.5 g에 황산 10 mL 및 촉매제를 첨가한 후 분해기(Tecator™ Digestor Auto, Foss, Hillerød, Denmark)를 이용하여 420℃에서 1시간 동안 분해하였다. 분해 후 단백질 자동분석기(Vapodest® 50s, C. Gerhardt GmbH & Co. KG, Königswinter, Germany)를 이용하여 질소 함량을 측정하였으며, 질소-단백질 환산계수(N×5.83)를 적용하여 조단백질 함량을 계산하였다.
조지방 함량은 자동 Soxhlet 추출 시스템(Soxtherm® SOX416, C. Gerhardt GmbH & Co. KG, Königswinter, Germany)을 이용하여 측정하였다. 분쇄 시료 2 g을 cellulose extraction thimble에 충진한 뒤 n-hexane 140 mL를 추출용매로 사용하여 지방을 추출하였다. 추출 공정은 187℃ 조건에서 수행되었으며, 가열 단계 30분과 환류 추출 단계 1시간으로 구성하였다. 추출이 완료된 수기는 105℃에서 건조한 후 데시케이터에서 냉각하여 항량을 측정하였으며, 추출 전후의 무게 차이를 이용하여 조지방 함량을 계산하였다. 조단백질 및 조지방 분석 결과는 수분함량을 보정하여 건물 기준(g/100 g dry weight, dw)으로 환산하였다.
Tryptophan을 제외한 구성 아미노산 분석은 Han et al. (2026)의 방법에 따라 산 가수분해 후 분석하였다. 분쇄 시료 0.3 g에 6 N hydrochloric acid 5 mL를 첨가하고 질소 가스를 충진하여 산소를 제거한 뒤, 밀봉 상태에서 110℃로 유지된 건조기에서 22시간 동안 가수분해하였다. 반응이 종료된 시료는 냉각 후 여과하였으며, 증류수를 이용하여 최종 부피를 50 mL로 조정하였다. 이후 시료를 희석한 뒤 0.22 µm PTFE syringe filter (Merck Millipore, Darmstadt, Germany)로 여과하여 분석용 시료로 사용하였다. 아미노산 조성은 아미노산 자동분석기(L-8800, Hitachi High-Tech Co., Tokyo, Japan)를 이용하여 분석하였으며, 분석에는 이온교환 컬럼(4.6 mm i.d.×60 mm, 3 µm, Hitachi High-Tech Co.)을 사용하였으며, sodium citrate buffer를 이동상으로 하는 ion-exchange chromatography 기반의 post-column ninhydrin 유도체화 방법으로 분석하였다. 이동상은 제조사에서 제공하는 protein hydrolysate analysis method에 따라 구배 용리하였으며, column oven 온도는 57℃로 유지하였다. 이동상 유속과 ninhydrin reagent의 유속은 각각 0.35 및 0.30 mL/min으로 설정하였다. 생성된 ninhydrin 유도체는 대부분의 아미노산에 대해 570 nm에서 검출하였으며, imino acids인 proline은 440 nm에서 검출하였다. 아미노산의 정량은 amino acid standard solution type A (Fujifilm Wako Pure Chemical Co., Osaka, Japan)를 이용하여 수행하였다.
Tryptophan은 산 가수분해 과정에서 분해될 수 있으므로 별도의 알칼리 가수분해 방법을 적용하였다(Çevikkalp et al., 2016). 분쇄 시료 0.5 g에 5 N sodium hydroxide 용액 20 mL을 첨가한 후 질소 가스를 주입한 후 110℃로 16시간 반응시켰다. 가수분해가 완료된 시료는 냉각 후 원심분리(10,000 rpm, 10분)하여 상층액을 회수하였으며, pH 6.3 완충용액을 이용하여 정용하였다. 이후 0.22 µm PVDF syringe filter (Merck Millipore)를 통과시켜 분석 시료로 사용하였다. Tryptophan 함량은 photodiode array detector가 장착된 UPLC system (Acquity UPLC, Waters, Milford, MA, USA)을 이용하여 분석하였다. 분리에는 Lichrospher 60 RP-Select B column (250 mm×4 mm, 5 µm, Agilent, Santa Clara, CA, USA)을 사용하였으며, ammonium acetate buffer (pH 6.3)와 acetonitrile 혼합용액을 이동상으로 사용하였다. Tryptophan은 280 nm에서 검출하였다.
단백질 품질은 in vitro 단백질 소화율과 아미노산 조성을 기반으로 단백질 소화율 보정 아미노산가(protein digestibility-corrected amino acid score, PDCAAS)를 산출하여 평가하였다(Schaafsma, 2000). In vitro 단백질 소화율은 protein digestibility assay kit (K- PDCAAS, Megazyme, Bray, Ireland)를 사용하여 제조사에서 제시한 방법에 따라 측정하였다. 시료 500 mg에 0.06 N hydrochloric acid를 가하여 37℃에서 전처리한 후 pepsin을 첨가하여 위 소화 과정을 모사하였다. 이후 tris buffer를 이용하여 반응액의 pH를 중성으로 조정한 다음 trypsin/chymotrypsin 혼합 효소를 첨가하여 추가 효소 분해를 수행하였다. 효소 반응 종료 후 trichloroacetic acid를 첨가하여 미분해 단백질을 침전시켰으며, 원심분리(3,000 rpm, 10분) 후 상층액을 회수하였다. 상층액 내 유리아미노산은 ninhydrin 반응을 이용하여 정량하였으며, 흡광도는 microplate reader (ELx808, BioTek Instruments Inc., Winooski, VT, USA)를 이용하여 520 nm에서 측정하였다. 단백질 소화율은 L-glycine 표준용액과 blank를 포함하여 계산하였다. 아미노산가(amino acid score)는 구성아미노산 분석 결과를 바탕으로 산출하였으며, 제1 제한아미노산(first limiting amino acid)을 기준으로 평가하였다. 최종적으로 단백질 소화율과 아미노산가를 이용하여 PDCAAS 값을 계산하였으며, 모든 계산은 Mega- Calc software (Megazyme, Bray, Ireland)를 이용하여 수행하였다.
기능성분 추출 및 함량 분석은 Han et al. (2026)의 방법에 따라 수행하였다. 분쇄 시료 3 g에 70% ethanol 30 mL을 첨가한 뒤 25℃에서 24시간 동안 진탕 추출하였다. 추출액은 원심분리(12,000 rpm, 20분, 4℃)하여 고형물을 제거한 후 상층액을 회수하였다. 추출물 내 지질 성분을 제거하기 위해 상층액에 n-hexane을 첨가하여 혼합한 다음 원심분리(3,000 rpm, 5분, 4℃)를 수행하고, 상부의 n-hexane 층을 제거하였다. 탈지 과정은 총 3회 반복하였다. Ethanol 층은 여과 후 감압농축하여 용매를 제거하였으며, 회수된 잔사의 무게를 기준으로 추출 수율을 계산하였다. 최종 추출물은 dimethyl sulfoxide에 재용해하여(100 mg extract/mL) 분석용 시료로 사용하였다.
기능 성분으로 총 폴리페놀 함량(total polyphenol content; TPC)과 총 플라보노이드 함량(total flavonoid content; TFC)을 각각 Folin-Ciocalteu 및 aluminum chloride colorimetric assay 방법을 이용하여 측정하였다. TPC 분석을 위해, 추출물 10 µL에 2% sodium carbonate 용액 200 µL를 혼합하여 3분 동안 반응시킨 뒤 50% Folin-Ciocalteu reagent 10 µL를 첨가하여 27분 동안 반응을 진행하였다. 반응액의 흡광도는 microplate reader (ELx808)를 이용하여 750 nm에서 측정하였다. 정량은 gallic acid를 표준물질로 하여 수행하였으며, 결과는 건물 100 g당 mg gallic acid equivalents (mg GAE/100 g dw)로 환산하였다. TFC 분석을 위해, 추출물 25 µL에 5% sodium nitrite 용액 7.5 µL와 증류수 100 µL를 혼합하여 5분 동안 반응시킨 뒤 10% aluminum chloride 용액 15 µL를 첨가하여 6분 동안 반응을 진행하였다. 이후 1 N sodium hydroxide 용액 50 µL를 첨가하여 11분 동안 반응시킨 후, 흡광도를 510 nm에서 측정하였다. Catechin을 이용하여 작성한 표준검량곡선을 바탕으로 건물 100 g당 mg catechin equivalents (mg CE/100 g dw)로 나타내었다.
항산화 활성은 2,2-diphenyl-1-picrylhydrazyl (DPPH) 및 2,2′- azinobis(3-ethylbenzothiazoline-6-sulfonic acid) (ABTS) 라디칼 소거능과 ferric reducing antioxidant power (FRAP)를 이용하여 평가하였다. 라디칼 소거능은 추출물 20 µL에 각각 DPPH 및 ABTS radical 용액 200 µL을 혼합하고 암조건에서 30분 동안 반응시킨 뒤, 517 nm 및 734 nm에서 흡광도를 측정하였다. 결과는 Trolox를 표준물질로 하여 작성한 검량곡선을 이용해 건물 100 g당 mg Trolox equivalents (mg TE/100 g dw)로 계산하였다.
FRAP assay는 추출물 6 µL에 FRAP reagent 180 µL와 증류수 18 µL를 혼합하여 10분 동안 반응시킨 후 593 nm에서 흡광도를 측정하여 분석하였다. 환원력은 FeSO4 기반 표준곡선을 이용하여 계산하였으며, 결과는 mM Fe2+ equivalents/100 g dw로 나타내었다.
결과 및 고찰
버섯 균사체 접종에 따른 귀리의 조단백질 및 조지방 함량 변화는 Table 1에 나타내었다. 대조구의 조단백질 및 조지방 함량은 각각 10.84 및 11.22 g/100 g dw으로, 이는 국내 귀리 품종의 일반적인 조성 범위와 유사한 수준이었다(Lee et al., 2016). 처리에 따른 조단백질 함량은 모든 균사체 처리구에서 대조구 대비 유의적으로 증가하였으며(p<0.05), 특히 YO 처리구에서 24.34 g/100 g dw으로 가장 높았다. 이는 대조구 대비 약 2.4배 증가한 수준이었다. 이러한 결과는 균사체 생장 과정에서 버섯 유래 단백질 성분이 귀리 기질 내에 축적되었기 때문으로 판단된다. 또한 고체 발효 과정 중 균사체가 탄수화물을 에너지원으로 이용함에 따라 상대적인 단백질 농축 효과가 나타났을 가능성도 있는 것으로 사료된다(Iqbal et al., 2024). 유사하게, 기존 연구에서도 버섯 및 사상균을 이용한 고체발효는 곡류 및 두류 기질의 단백질 함량과 영양학적 특성을 향상시키는 것으로 보고된 바 있다(Wang et al., 2025). 특히 YO 처리구에서 가장 높은 조단백질 함량을 나타낸 것은 노랑느타리버섯 균사체의 상대적으로 우수한 생장 특성 및 균사체 biomass 축적 능력과 관련이 있을 것으로 판단된다. Pleurotus spp.는 다른 식용버섯류에 비해 비교적 높은 단백질 함량과 균형 잡힌 아미노산 조성을 갖는 것으로 보고되었으며(Gerber et al., 2026), 기질 이용 효율이 우수하여 곡물 기반 배지에서 균사체 생장이 활발한 것으로 알려져 있다. 따라서 노랑느타리버섯 균사체의 활발한 생장 및 균사체 biomass 축적이 귀리 기질의 단백질 함량 증가에 영향을 미친 것으로 판단된다.
| Treatments | Crude protein | Crude lipid |
|---|---|---|
| Control | 10.84±0.05d | 11.22±0.21b |
| SH1) | 14.88±0.06b | 7.58±0.03c |
| CH | 13.74±0.11c | 4.00±0.01e |
| SI | 13.85±0.08c | 5.57±0.07d |
| YO | 26.34±0.12a | 18.27±0.02a |
조지방 함량은 SH, CH 및 SI 처리구에서 대조구 대비 감소한 반면, YO 처리구에서는 18.27 g/100 g dw로 가장 높았다(p<0.05). 일반적으로 균사체 발효 과정에서는 균사체가 기질 내 탄수화물 및 지질 성분을 에너지원으로 이용함에 따라 조지방 함량이 감소하는 경향이 보고되어 있다(Martins et al., 2011; Iqbal et al., 2024). 실제로 SH, CH 및 SI 처리구에서는 이러한 경향이 나타난 것으로 판단된다. 반면 YO 처리구의 경우 조지방 함량이 증가하였는데, 이는 다음과 같은 복합적인 대사 및 구조적 요인에 기인한 것으로 해석된다. 첫째, 고체발효 과정 중 균사체가 기질 내 탄수화물(전분 및 식이섬유 등)을 에너지원으로 활용하여 호흡 대사를 진행하고, 이 과정에서 CO2와 H2O가 비산됨에 따라 전체 건조 총중량(dry matter)이 감소하는 농축 효과(concentration effect)가 발생하여 상대적인 지방 함량 비율이 상승하였다. 둘째, 노랑느타리버섯 균사체는 탄소원을 소비하며 세포 내 지질(중성지질 및 세포막 인지질)을 적극적으로 합성·축적하는 담자균류 특유의 지질 대사 특성을 지닌다. 발효가 진행됨에 따라 균사체 세포막의 주요 구성 성분인 불포화지방산(예: 올레산, 리놀레산 등)의 합성 비중이 높아지거나, 포화지방산에서 불포화지방산으로의 전환 대사 경로(desaturase enzyme activity)가 활성화되었을 가능성이 높다. 셋째, 균사체가 분비하는 섬유소 분해효소(cellulase, xylanase 등)에 의해 기질 세포벽 결합 조직에 갇혀 있던 불용성 지질 성분이 유휴화(solubilized/released) 되어, 분석 과정에서 조지방으로 더욱 용이하게 추출되었기 때문이다. 이처럼 YO 처리구의 조지방 증가 현상은 단순한 수치적 함량 상승을 넘어, 균사체 증식에 따른 지질 조성의 정성적 변화 및 불포화지방산 비중 확대를 동반함으로써 최종 발효물의 영양학적·기능적 가치 향상에 크게 기여한 것으로 사료된다.
버섯 균사체 접종에 따른 귀리의 구성 아미노산 조성 변화는 Table 2에 나타내었다. 대부분의 구성 아미노산 함량은 균사체 접종에 따라 증가하는 경향을 나타냈으며, 그 증가폭은 YO 처리구에서 가장 두드러졌다. 총 아미노산 함량은 YO 처리구에서 22.42 g/100 g dw으로 가장 높았고, 이는 대조구(9.57 g/100 g dw)의 약 2.3배 수준이었다. 필수 아미노산 조성 역시 균사체 종류에 따라 상이한 양상을 보였다. Lysine 함량은 모든 접종 처리구에서 증가하였고, YO 처리구에서 0.96 g/100 g dw으로 가장 높았다. 반면, SH 처리구에서는 tryptophan 및 valine 함량이 대조구 대비 유의적으로 감소하였다(p<0.05). 특히 tryptophan 함량은 YO 처리구를 제외한 모든 균사체 접종 처리구에서 감소하였다. 총 아미노산 대비 필수 아미노산의 비율은 YO (0.39), SI (0.36), CH (0.35) 순으로 높았으며, SH 처리구(0.32)는 대조구(0.33)보다 낮았다. 근육 단백질 합성과 관련된 아미노산인 분지사슬형 아미노산 함량은 균사체 접종 처리구에서 전반적으로 증가하는 경향을 보였으나, SH 처리구에서는 valine 함량 감소의 영향으로 증가폭이 상대적으로 낮았다. 반면, YO 처리구는 3.61 g/100 g dw로 가장 높은 분지사슬형 아미노산 함량을 나타내어 단백질 영양학적 가치가 우수하였다. 황함아미노산 함량은 균사체 접종 처리구에서 전반적으로 증가하였으며, 이러한 변화는 methionine 함량 증가에 주로 기인하였다. Methionine 함량은 대조구에서 0.07 g/100 g dw이었던 반면, 균사체 접종 처리구는 0.12(SH)~1.32(YO) g/100 g dw 범위로 증가하였다. 특히 YO 처리구의 methionine 함량은 대조구 대비 약 18.9배 높은 수준이었다. 일반적으로 노랑느타리버섯 자실체 및 균사체는 methionine 및 tryptophan 함량이 낮은 것으로 알려져 있으나, 본 연구의 YO 처리구에서는 methionine 함량이 크게 증가하였다. 이는 기질 고체발효 시 균사체 특유의 메티오닌 생합성 대사 경로(Homoserine 유래 transsulfuration pathway)가 활성화되었을 가능성을 보여준다. 특히 본 발효 기질에 포함된 황 함유 유기물이나 무기 황 성분을 균사체가 효율적으로 이용하면서 황함유 아미노산(methionine, cysteine)의 동화 작용(sulfur assimilation)이 촉진된 것으로 사료된다. 또한 균사체가 기질 내 포함되어 있던 타 단백질을 재구성하는 과정에서 메티오닌을 저분자 펩타이드나 유리 형태로 방출·축적시켰을 가능성이 높으며, 이는 본 고체발효 기질 환경과의 상호작용에 따른 종 특이적 대사 결과로 판단된다. 반면, cysteine 함량은 균사체 종류에 따라 상이한 경향을 보였으며, SI 및 YO 처리구에서는 증가한 반면 SH 및 CH 처리구에서는 감소하였다. 발효물 내 아미노산 프로파일의 변화는 원료 기질의 분해뿐만 아니라 증식한 버섯 균사체 자체의 단백질 및 아미노산 조성에 큰 영향을 받는다. 선행 문헌에 따르면 버섯 균사체 단백질은 glutamic acid, aspartic acid, leucine, lysine 등이 풍부한 반면, 일부 종에서는 특정 황함유 아미노산이나 방향족 아미노산의 비중이 다르게 보고된다(Bakratsas et al., 2021; Li et al., 2022). 따라서 발효 후 특정 아미노산의 비율이 증가하거나 축적된 것은 기질 단백질 분해산물과 더불어 균사체가 자체 합성한 세포 단백질 및 유리아미노산 풀(pool)이 반영된 결과로 해석된다.
a-e Means with different letters within the same column are significantly different (p<0.05) according to Duncan’s multiple range test.
단백질 품질 특성 분석 결과는 Table 3에 나타내었다. In vitro 단백질 소화율은 처리구에 따라 0.85~0.95 범위를 보였으며, YO 처리구에서 가장 높았다. 발효 후 in vitro 단백질 소화율이 향상된 결과는, 버섯 균사체가 분비하는 분해효소(protease 및 peptidase) 작용에 기인한 것으로 해석된다. 고체발효 과정 동안 균사체는 기질 내 고분자 단백질 구조를 분해하여 저분자 펩타이드 및 유리 아미노산 형태로 전환시킨다. 또한, 발효 전 기질에 존재하는 단백질 소화 저해 인자(antinutritional factors)가 균사체 대사에 의해 불활성화되거나 구조가 파괴됨으로써 소화효소(pepsin/pancreatin)의 접근성이 높아진 것 역시 소화율 향상에 기여한 것으로 판단된다. 이러한 단백질의 저분자화 및 구조적 변화는 체내 흡수율과 생체이용률(bioavailability)을 유의미하게 증대시킬 수 있음을 시사한다. 제1 제한 아미노산은 대조구와 SH, CH 및 YO 처리구에서 lysine으로 확인된 반면, SI 처리구에서는 tryptophan으로 나타났다. 이는 균사체 종(species)에 따른 질소원 이용 기작 및 단백질 합성 대사의 차이에서 비롯된 것으로 해석된다. 버섯 균사체는 기질 내 단백질을 분해하여 세포 구성 단백질로 재합성하는 과정에서, 특정 균주마다 방향족 아미노산(Aromatic amino acids)인 트립토판의 생합성 경로 효소 활성 또는 요구량에 차이를 보인다. SI 균사체의 경우 발효 과정에서 트립토판을 균사체 자체 성장을 위한 일차 대사산물 및 이차 대사산물(예: 옥신 계열 물질 또는 인돌계 화합물)의 전구체로 우선 소비했을 가능성이 존재한다. 이에 따라 발효 잔류물 내 트립토판 비율이 상대적으로 감소하여 제1 제한 아미노산으로 나타난 것으로 판단된다. 아미노산가는 균사체 종류에 따라 차이를 보였는데, SH, CH 및 YO 처리구는 각각 0.55~0.65 범위로 대조구(0.26)보다 높았으나, SI 처리구는 0.08로 가장 낮았다. PDCAAS 값은 아미노산가의 영향을 받아 YO 처리구에서 0.60으로 가장 높았고, SI 처리구에서 0.07로 가장 낮았다. SH와 CH 처리구 역시 0.55 수준으로 대조구보다 높아, YO 처리구와 함께 단백질 품질 특성 개선 경향을 나타냈다.
균사체 접종에 따른 귀리의 구성 아미노산 및 단백질 품질 특성 변화는 고체발효 과정 중 fungal biomass 축적과 기질 내 단백질의 생물학적 전환에 기인한 것으로 판단된다. 최근 연구에서는 식물성 단백질 소재에 대한 균류 고체발효가 단백질 함량, 아미노산 조성 및 소화율 개선에 효과적인 전략으로 보고되고 있으며(Feng et al., 2023; Wang et al., 2025), 버섯 균사체 발효는 식물성 단백질의 영양학적 품질과 기능성을 향상시키는 것으로 알려져 있다(Clark et al., 2022). 본 연구에서도 대부분의 구성 아미노산 함량과 총 아미노산 함량이 균사체 접종 처리구에서 증가하였으며, 특히 YO 처리구에서 가장 높은 수준을 나타냈다. 이러한 결과는 느타리버섯 균사체 발효가 식물성 기질의 단백질 함량 및 영양성분을 증가시킨다는 Iqbal et al. (2024)의 연구 결과와 유사한 경향이었다.
특히 YO 처리구에서는 분지사슬형 아미노산과 methionine 함량 증가가 두드러졌으며, 아미노산가 및 PDCAAS 또한 가장 높은 수준을 보였다. 분지사슬형 아미노산은 근육 단백질 합성과 근육 유지에 중요한 역할을 하는 필수 아미노산으로 알려져 있으며, 최근에는 근감소증 예방 및 고령친화형 단백질 소재 개발 측면에서 중요성이 강조되고 있다(He et al., 2025; Calderón et al., 2026). 또한 대체 단백질 소재의 영양학적 평가에서 단백질 품질과 필수 아미노산 균형이 중요한 요소로 보고되고 있다(Heijden et al., 2023; Ajomiwe et al., 2024). 따라서 YO 처리구에서 확인된 높은 분지사슬형 아미노산 함량과 개선된 PDCAAS는 균사체 접종 귀리가 단백질 품질 측면에서 우수한 식물성 단백질 소재로 활용될 가능성을 시사한다. 반면 SI 처리구에서는 tryptophan이 제1 제한 아미노산으로 확인되었으며, 아미노산가와 PDCAAS 또한 가장 낮았다. 특히 tryptophan 함량은 YO 처리구를 제외한 대부분의 균사체 접종 처리구에서 감소하는 경향을 보였다. 이는 균사체 종류에 따라 질소 이용 특성 및 아미노산 대사 경로가 상이하기 때문으로 판단되며, 균류 발효 과정에서 특정 아미노산의 선택적 이용 및 전환이 발생할 수 있다는 보고와도 관련될 수 있다(Feng et al., 2023; Wang et al., 2025). 이러한 결과는 균사체 접종이 단순한 단백질 함량 증가뿐 아니라 아미노산 균형과 단백질 품질 특성에도 영향을 미칠 수 있음을 의미한다. 일반적으로 곡류 단백질은 lysine 함량이 낮아 단백질 품질이 제한되는 것으로 알려져 있으며(Schaafsma, 2000; FAO, 2013), 귀리 역시 lysine 제한 특성을 갖는 대표적인 곡류 단백질로 보고된 바 있다. 본 연구에서는 대부분의 균사체 접종 처리구에서 lysine 함량과 총 아미노산 대비 필수 아미노산의 비율이 증가하였고, SH, CH 및 YO 처리구의 PDCAAS 또한 대조구보다 높았다. 이는 식용버섯 균사체 접종이 귀리 단백질의 제한아미노산 특성을 부분적으로 보완하고 단백질 품질 개선에 기여할 수 있음을 시사한다.
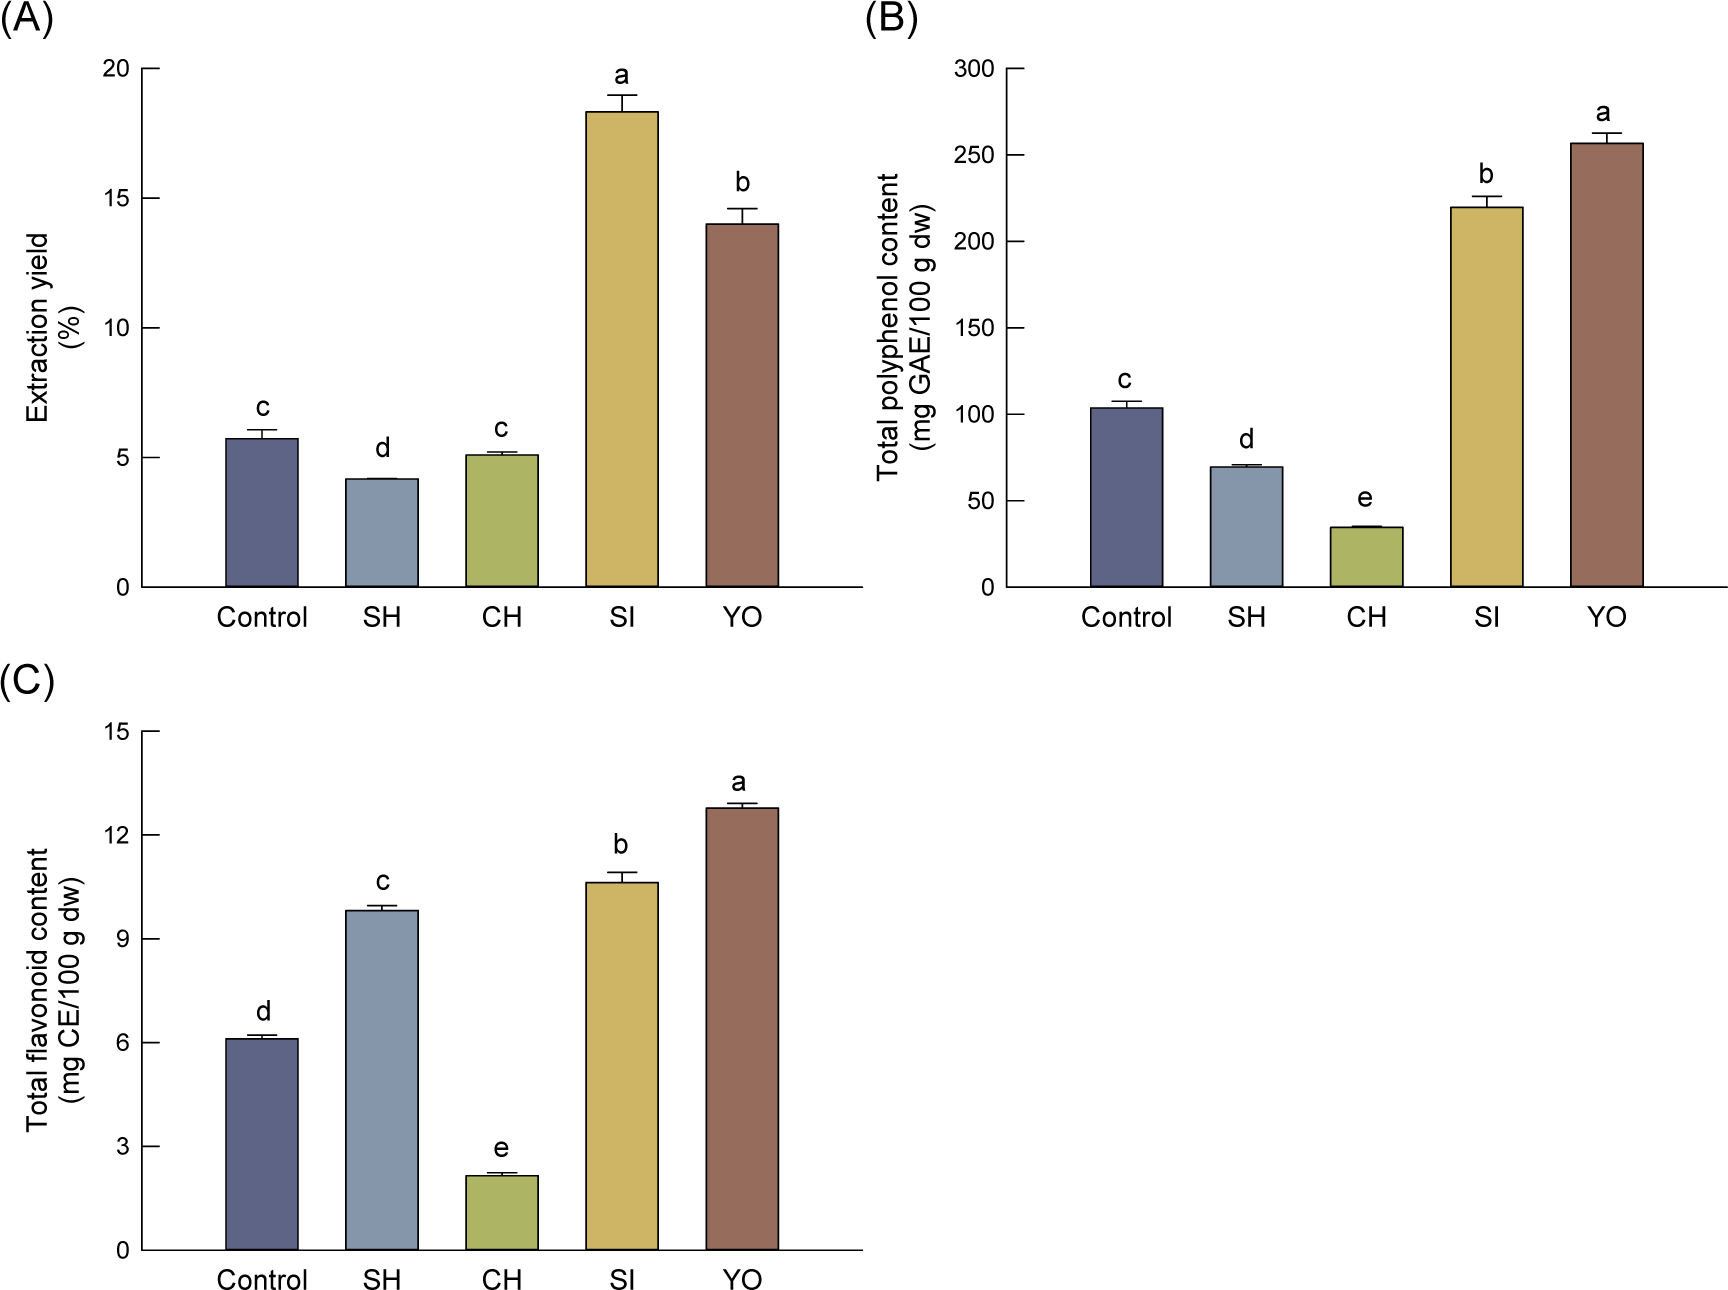
버섯 균사체 접종에 따른 귀리의 추출 수율, TPC 및 TFC 분석 결과는 Fig. 1에 나타내었다. 추출 수율은 균사체 종류에 따라 유의적인 차이를 보였으며(p<0.05), SI 및 YO 처리구에서 각각 18.32% 및 14.00%로 가장 높았다. 반면 SH 및 CH 처리구의 추출 수율은 각각 4.18% 및 5.09%로 대조구(5.72%) 보다 낮거나 유사한 수준이었다. TPC와 TFC 또한 균사체 종류에 따라 상이한 경향을 보였다. YO 처리구의 TPC와 TFC는 각각 256.66 mg GAE/100 g dw 및 12.77 mg CE/100 g dw로 가장 높았으며, SI 처리구 역시 대조구 보다 높았다. 반면 CH 처리구는 추출 수율과 함께 TPC 및 TFC 또한 감소하여 기능성 성분 증진 효과가 제한적인 것으로 나타났다. 특히 SH 처리구의 TPC는 67.49 mg GAE/100 g dw로 대조구(103.58 mg GAE/100 g dw)보다 낮았으나, TFC는 9.82 mg CE/100 g dw로 대조구(6.11 mg CE/100 g dw) 대비 증가하였다. 이러한 결과는 SH 균사체 접종이 전체 폴리페놀 함량 증가보다는 플라보노이드 성분 축적에 보다 효과적으로 작용하였음을 시사한다.
항산화 활성 분석 결과는 Fig. 2에 나타내었다. 전반적인 항산화 활성은 TPC 및 TFC 변화와 유사한 경향을 보였으며, SI 및 YO 처리구에서 가장 우수하였다. DPPH 및 ABTS 라디칼 소거능은 YO 처리구에서 각각 123.47 mg TE/100 g dw 및 218.24 mg TE/100 g dw으로 가장 높았고, SI 처리구 역시 높은 활성을 보였다. 반면 CH 처리구는 DPPH 및 ABTS 라디칼 소거능이 각각 12.90 및 39.54 mg TE/100 g dw으로 대조구보다 낮았다. FRAP 분석 결과에서는 SI 처리구가 12.64 mM Fe2+/g dw으로 가장 높았고, YO 처리구 또한 9.18 mM Fe2+/g dw로 우수한 활성을 보였다. 반면 대조구와 CH 처리구는 상대적으로 낮은 활성을 보였다. 특히 SH 처리구는 ABTS 라디칼 소거능은 대조구보다 낮았으나, DPPH 라디칼 소거능 및 FRAP 값은 각각 36.02 mg TE/100 g dw 및 3.83 mM Fe2+/g dw으로 대조구보다 높았다. 이러한 결과는 SH 처리구에서 확인된 높은 TFC와 관련된 것으로 판단되며, 해당 처리구에서는 TPC보다 TFC가 항산화 활성에 더 큰 영향을 미쳤을 가능성이 있다.
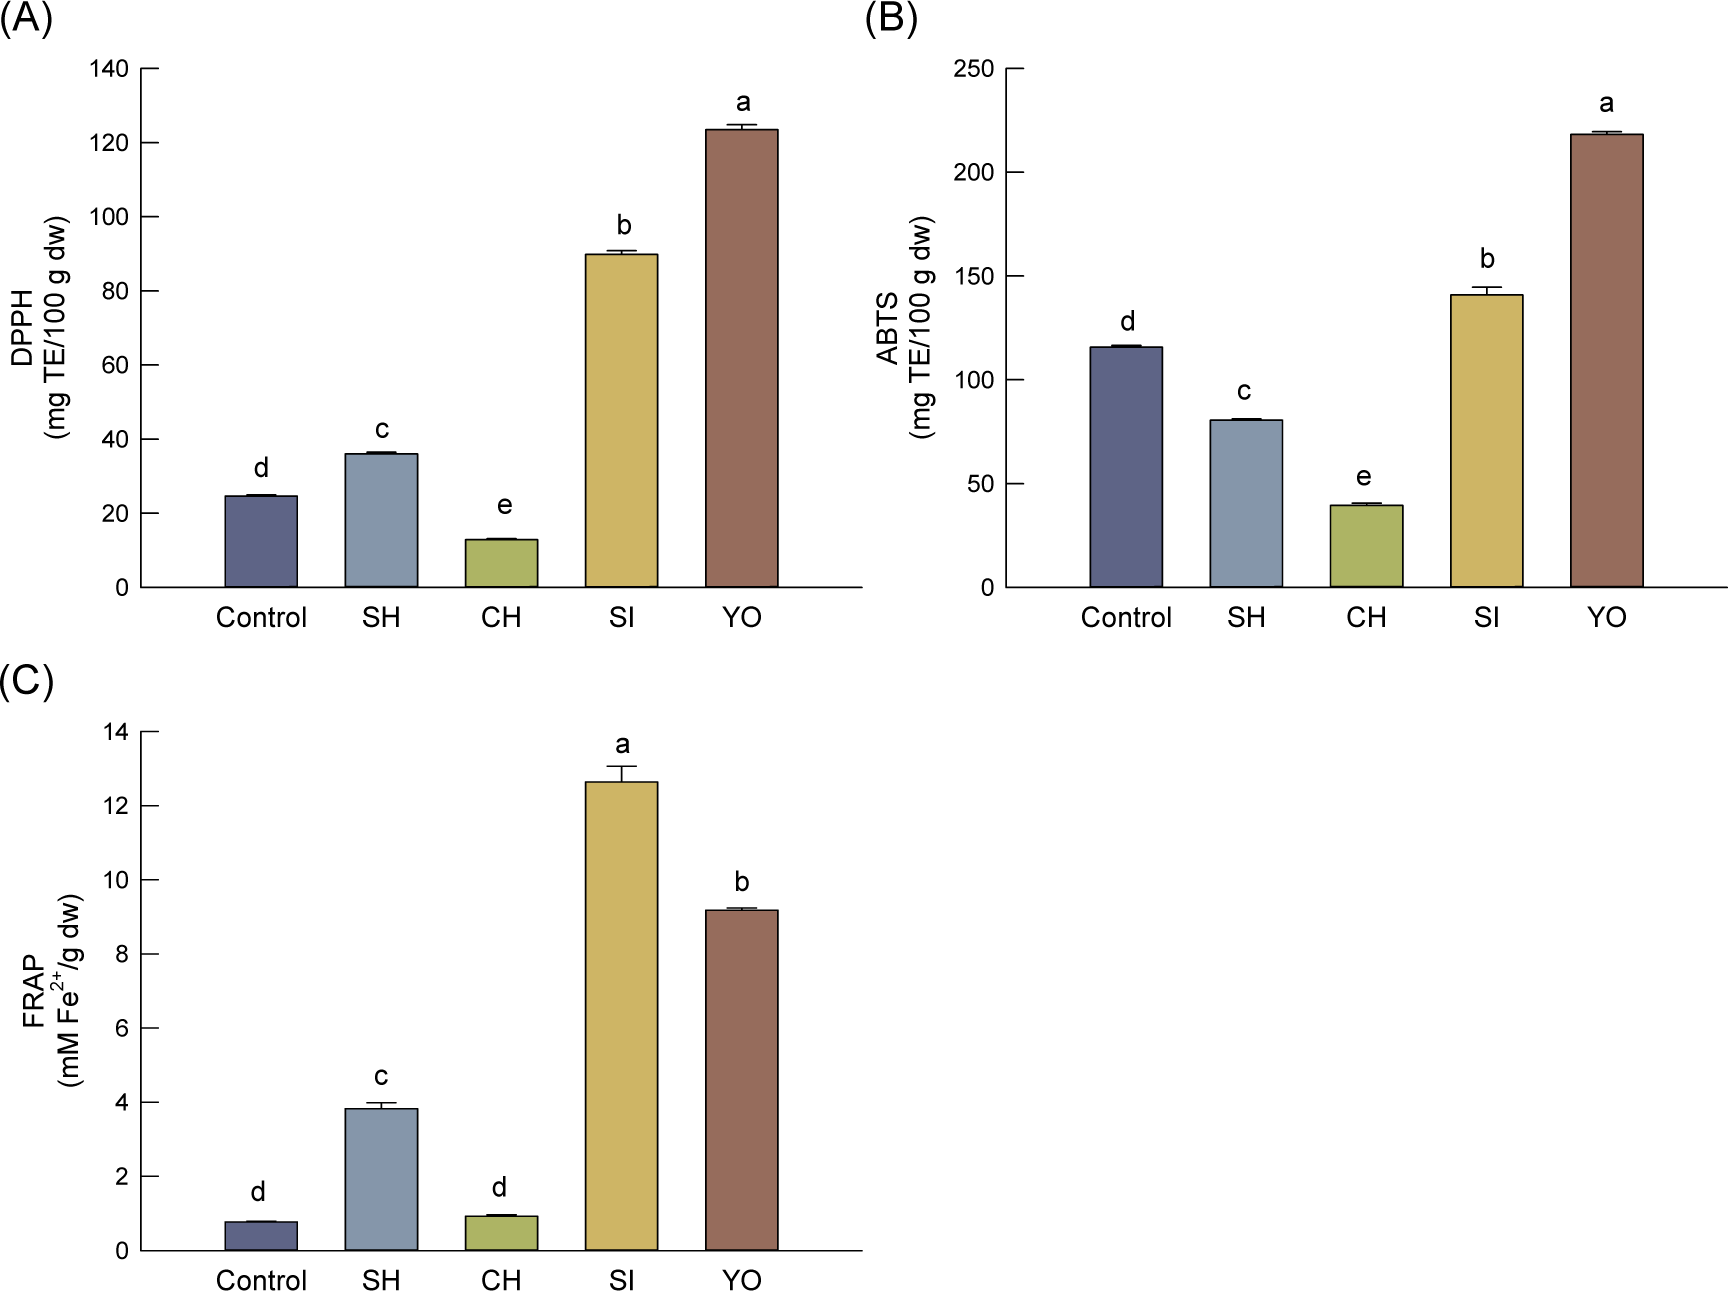
기능성분 및 항산화 활성 변화는 균사체 종류에 따른 기질 분해 특성 및 생리활성 물질 생성 차이와 연관될 가능성이 있다. 최근 연구에서는 버섯 균사체를 이용한 고체발효가 세포벽 분해 효소 및 다양한 대사 효소의 작용을 통해 결합형 페놀성 화합물의 유리와 기능성 성분의 생합성을 촉진할 수 있다고 보고되었다(Martins et al., 2011; Feng et al., 2023). 본 연구에서도 SI 및 YO 처리구는 높은 추출 수율과 함께 TPC, TFC 및 항산화 활성이 모두 증가하는 경향을 보였다. 특히 YO 처리구는 DPPH 및 ABTS 라디칼 소거능에서 가장 높은 활성을 나타냈으며, 이는 높은 TPC 및 TFC 함량과 관련된 것으로 판단된다. 반면 SI 처리구는 가장 높은 FRAP 활성을 보여, 균사체 종류에 따라 항산화 기작 및 활성 발현 양상이 다르게 나타날 수 있음을 시사하였다. 이러한 결과는 느타리버섯 균사체 발효가 식물성 기질의 기능성 성분과 항산화 활성을 향상시킨다는 Iqbal et al. (2024)의 연구 결과와 유사하다. 반면 CH 처리구는 추출 수율과 기능성 함량이 모두 낮았으며, 항산화 활성 또한 대조구보다 감소하였다. 이는 균사체 종류에 따라 귀리 기질 이용 효율 및 기능성 대사산물 생성 능력에 차이가 존재함을 의미한다. 한편 SH 처리구는 상대적으로 낮은 추출 수율과 TPC를 보였음에도 불구하고 TFC와 일부 항산화 활성이 증가하였다. 특히 DPPH 라디칼 소거능 및 FRAP 활성 증가는 SH 처리구의 높은 TFC와 부분적으로 관련될 가능성이 있으며, 이는 버섯 균사체 종류에 따라 생성되거나 전환되는 페놀성 화합물의 조성이 달라질 수 있음을 시사한다(Dhakal et al., 2019; Tee et al., 2024). 그러나 본 연구에서는 TPC 및 TFC 수준에서 기능성 성분 변화를 평가하였기 때문에, 환원력을 갖는 다양한 비페놀성 화합물(당, 아미노산 등)에 의해 간섭을 받을 수 있으며, 개별 항산화 성분의 구조와 정량적 변화의 구체적인 기작을 설명하는 데에는 한계가 있다. 따라서 향후 연구에서는 HPLC-MS, GC-MS 등을 활용하여 고체발효 과정에서 세부적으로 변환되는 대표 개별 페놀성 화합물(예: gallic acid, ferulic acid 등) 및 균사체 특이적 유기산/단백질 유래 기능성 물질을 정밀 동정하는 추가 분석이 필요할 것으로 사료된다.
본 연구에서는 식용버섯 균사체 접종이 귀리의 단백질 품질과 기능성 성분 특성에 미치는 영향을 평가하였다. 그 결과, 균사체 종류에 따라 아미노산 조성, 단백질 품질 및 항산화 활성에 차이가 나타났으며, 특히 YO 처리구에서 총 아미노산, 분지사슬형 아미노산, methionine, PDCAAS, TPC, TFC 및 항산화 활성이 전반적으로 가장 우수하였다. 반면 SH 처리구는 TFC 증가에 특징적인 경향을 보였고, CH 처리구는 기능성 증진 효과가 제한적이었다. 이러한 결과는 식용 버섯 균사체 접종이 귀리의 영양학적 및 기능성 특성을 개선할 수 있는 효과적인 전략임을 시사하며, 특히 YO 균사체 접종 귀리는 고령친화형 기능성 식물성 단백질 소재로 활용 가능성이 높을 것으로 판단된다.
요 약
본 연구에서는 식용버섯 균사체 접종이 귀리의 단백질 품질 및 기능성 성분 특성에 미치는 영향을 평가하였다. 귀리에 상황버섯(SH), 차가버섯(CH), 표고버섯(SI) 및 느타리버섯(YO) 균사체를 접종하여 고체발효를 수행한 후, 구성 아미노산 조성, 단백질 품질 특성, 총 폴리페놀 함량(TPC), 총 플라보노이드 함량(TFC) 및 항산화 활성을 분석하였다. 대부분의 구성 아미노산 함량은 균사체 접종 처리구에서 증가하였으며, YO 처리구에서 총 아미노산 함량이 가장 높았다(22.42 g/100 g dw). 또한 YO 처리구는 분지사슬형 아미노산, methionine 및 PDCAAS 값이 가장 높아 우수한 단백질 품질 특성을 나타냈다. 반면 SI 처리구에서는 tryptophan이 제1 제한 아미노산으로 확인되었으며, PDCAAS 값이 낮았다. 기능성 성분 분석 결과, SI 및 YO 처리구는 높은 추출 수율과 함께 TPC 및 TFC가 증가하였으며, YO 처리구는 각각 256.66 mg GAE/100 g dw 및 12.77 mg CE/100 g dw로 가장 높았다. 항산화 활성 또한 기능성 성분 변화와 유사한 경향을 보였으며, YO 처리구는 DPPH 및 ABTS 라디칼 소거능에서 가장 높은 활성을 나타냈고, SI 처리구는 가장 높은 FRAP 활성을 보였다. 반면 CH 처리구는 기능성 성분 및 항산화 활성이 모두 낮아 기능성 증진 효과가 제한적이었다. 이러한 결과는 식용 버섯 균사체 접종이 귀리의 단백질 및 기능성 특성을 개선할 수 있는 효과적인 전략임을 시사하며, 특히 YO 균사체 접종 귀리는 고령친화형 기능성 식물성 단백질 소재로 활용 가능성이 높을 것으로 판단된다.


